
Master webinar complement systeem (accreditatie wordt bij KTNO aangevraagd) na afloop van webinar een controle vraag goed beantwoorden en je krijgt een certificaat.
Duur kijken circa een 45 minuten.
Master ITE: Het complementsysteem – de diepte in
Complement kan ontsteking versterken en membranen beschadigen. Maar zonder complement verliezen we ook een belangrijk opruim- en tolerantiemechanisme.
Het complementsysteem wordt vaak voorgesteld als één ontstekingscascade die moet worden afgeremd zodra zij te actief wordt.
Maar complement doet veel meer.
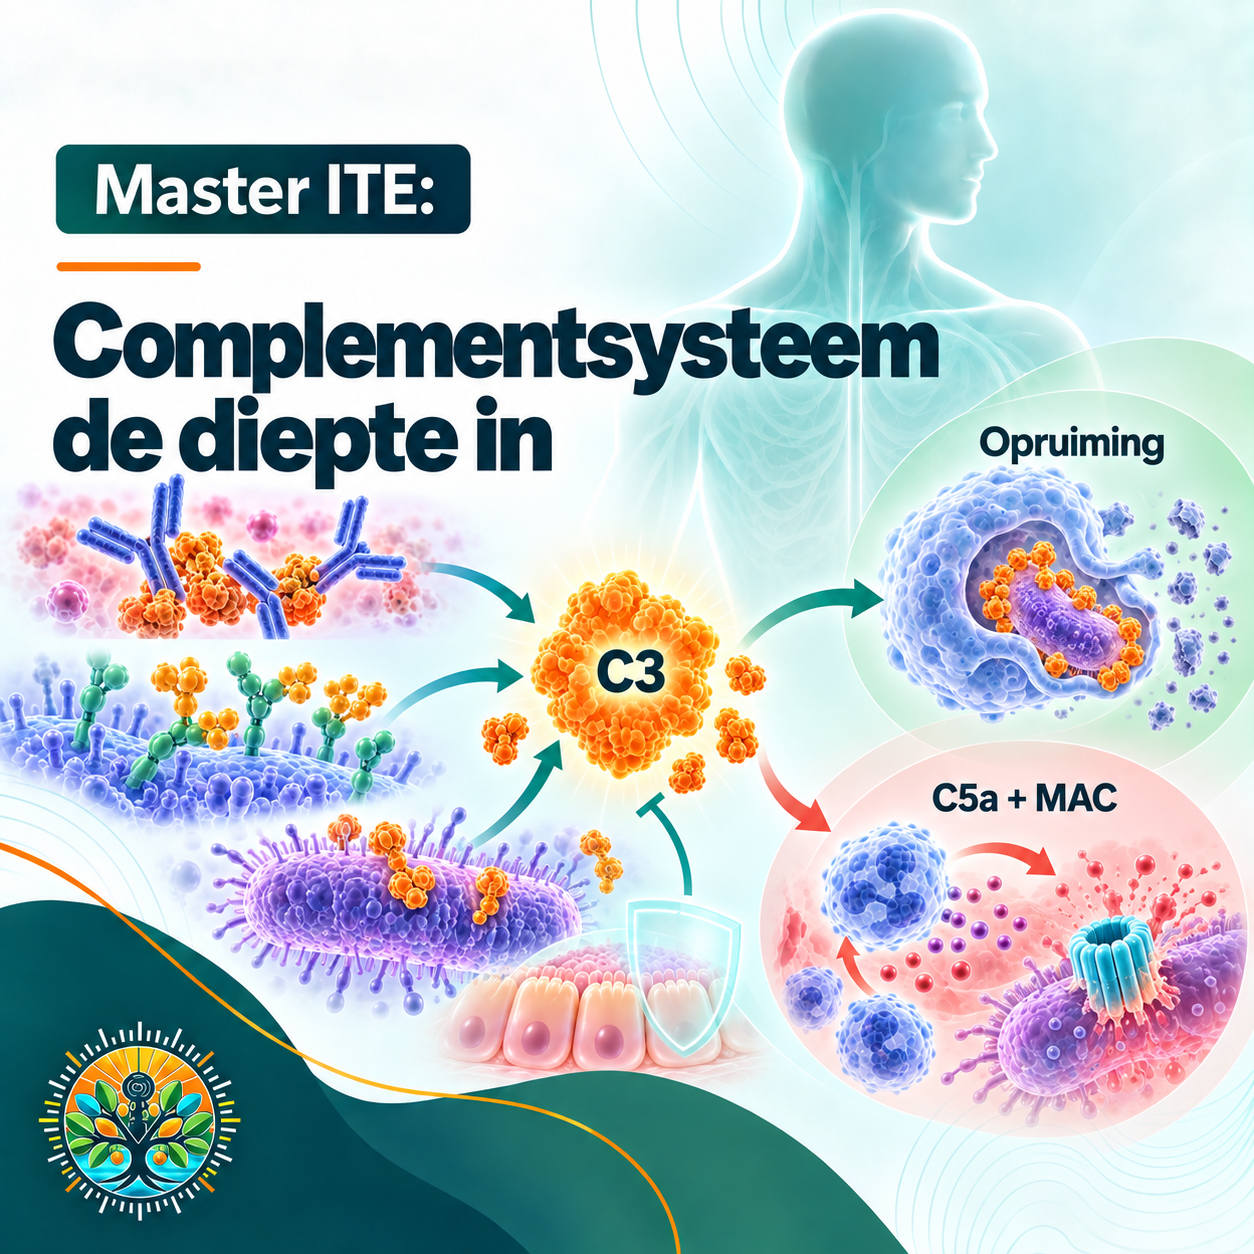
Het is een snel herkennings-, versterkings- en opruimnetwerk. Het markeert micro-organismen, immuuncomplexen en celresten voor fagocytose, rekruteert immuuncellen en kan met het membrane attack complex rechtstreeks ingrijpen op membranen.
Tegelijkertijd helpt complement beschadigde en apoptotische cellen geruisloos op te ruimen. Juist deze opruiming voorkomt dat nucleair materiaal langdurig zichtbaar blijft en nieuwe auto-immuunreacties kan voeden.
De centrale vraag is daarom niet:
Moet het complementsysteem aan of uit?
Maar:
Welke complementfunctie is actief, op welke plaats, hoe lang en wordt zij voldoende begrensd?
In deze Master ITE nemen Monique van Poorten en Jolande Bakker je stap voor stap mee door het volledige complementsysteem: van de drie activatieroutes tot C3, C5, opsonisatie, inflammatie, MAC en de remmen die eigen weefsel moeten beschermen.
Drie ingangen, één centraal knooppunt
Complement kan via drie routes worden geactiveerd.
De klassieke route start onder andere wanneer C1q bindt aan antistoffen die al op een target of in een immuuncomplex gebonden zijn. Daardoor is deze route bijzonder relevant bij auto-immuniteit.
De lectineroute gebruikt onder andere MBL en ficolinen om bepaalde koolhydraatpatronen te herkennen. Hiervoor zijn geen antistoffen nodig.
De alternatieve route staat voortdurend op een lage waakvlam. Door spontane activering van C3 ontstaat een vorm van tick-over. Op geschikte oppervlakken kan deze route vervolgens snel versnellen.
Hoewel de trigger verschilt, komen de routes samen bij de vorming van C3-convertases. Vanaf dat centrale punt kan een krachtige versterkingslus ontstaan.
De alternatieve route is daarbij niet alleen een zelfstandige ingang. Zij kan ook C3b versterken dat oorspronkelijk via de klassieke of lectineroute is ontstaan.
Een klein startsignaal kan daardoor uitgroeien tot een omvangrijke complementreactie.
C3: alarm én markering
C3 vormt het centrale knooppunt van het complementsysteem.
Wanneer C3 wordt geknipt, ontstaan twee fragmenten met verschillende functies.
C3a is een oplosbaar alarmsignaal dat via de C3a-receptor vaat- en immuunreacties kan beïnvloeden.
C3b bindt aan een oppervlak en markeert dit voor opruiming. Fagocyten kunnen via complementreceptoren deze gemarkeerde micro-organismen, immuuncomplexen en celresten herkennen en verwijderen.
C3b helpt bovendien bij de vorming van nieuwe convertases. Daardoor kan steeds meer C3 worden geknipt en steeds meer oppervlak worden gemarkeerd.
C3-splitsing is dus niet het eindpunt. Het opent de krachtige amplificatielus van complement.
C5 verdeelt inflammatie en membraanschade
Wanneer voldoende C3b aan een convertase wordt toegevoegd, ontstaat een C5-convertase.
Deze knipt C5 in C5a en C5b.
C5a is een zeer krachtig anafylatoxine. Het rekruteert en activeert onder andere neutrofielen en beïnvloedt vaatreacties.
C5b vormt het begin van de terminale route. Samen met C6, C7, C8 en meerdere C9-moleculen ontstaat het membrane attack complex: C5b–9 of MAC.
MAC kan poriën in een membraan vormen en daardoor een cel beschadigen of lyseren.
Maar MAC betekent niet altijd dat een cel direct openbarst. Wanneer slechts beperkte hoeveelheden worden afgezet, kan sublytische signalering ontstaan. De cel blijft dan leven, maar kan wel van gedrag veranderen en inflammatoire of stressgerelateerde signalen gaan produceren.
Complement beschermt alleen wanneer activatie en remming samenwerken
Complement reageert snel en kan zichzelf krachtig versterken. Daarom beschikt het lichaam over meerdere remmen.
C1-INH begrenst de vroege klassieke en lectineroute. C4BP en factor H helpen convertases afbouwen. Factor I knipt C3b en C4b in fragmenten die niet langer dezelfde versterkende functie hebben.
Ook eigen cellen dragen membraangebonden bescherming:
- CD46 helpt factor I bij de afbraak van complementfragmenten;
- CD55 versnelt het uiteenvallen van C3- en C5-convertases;
- CD59 voorkomt dat C9 verder polymeriseert en blokkeert daarmee de vorming van een volledig MAC.
Deze regulatie maakt het verschil tussen een plaatselijke, tijdelijke afweerreactie en beschadiging van het eigen weefsel.
Niet alleen de hoeveelheid activatie is belangrijk. De verhouding tussen afzetting, versterking en remming bepaalt de uitkomst.
Factor H helpt ‘eigen’ oppervlak herkennen
Factor H is een belangrijke remmer van de alternatieve route.
Het kan tegelijk C3b en kenmerken van eigen celoppervlakken herkennen. Hierdoor helpt factor H voorkomen dat de alternatieve versterkingslus onbeperkt op lichaamseigen structuren doorgaat.
Factor H kan factor B verdringen, het uiteenvallen van de alternatieve C3-convertase versnellen en factor I helpen om C3b af te breken tot iC3b.
De actieve convertase stopt dan, terwijl een deel van de markering voor opruiming behouden kan blijven.
Dit is een prachtig voorbeeld van biologische regulatie: het systeem hoeft niet te kiezen tussen volledig actief of volledig uitgeschakeld. De destructieve versterking kan worden beëindigd terwijl opruiming nog mogelijk blijft.
Opruiming is óók een tolerantiemechanisme
Complement wordt vaak uitsluitend gekoppeld aan ontsteking en weefselschade. Maar de vroege complementcomponenten zijn ook belangrijk voor stille opruiming.
C1q en C3-fragmenten markeren apoptotische celresten en immuuncomplexen. Via complementreceptoren kunnen fagocyten en erytrocyten helpen dit materiaal af te voeren.
Wanneer deze opruiming tekortschiet, kunnen nucleaire structuren langer zichtbaar blijven. Daardoor neemt de kans toe op immuuncomplexvorming, interferonsignalering en verlies van tolerantie.
Een tekort aan vroege complementcomponenten zoals C1q, C2 of C4 is daarom sterk geassocieerd met lupusachtige auto-immuniteit.
Dit leidt tot een schijnbare paradox:
te weinig vroege complementfunctie kan auto-immuniteit bevorderen, terwijl te veel of verkeerd gelokaliseerde complementactivatie weefselschade kan veroorzaken.
Minder complement is dus niet automatisch minder auto-immuniteit.
Bij SLE raken slechte opruiming en overmatige activatie verweven
Bij systemische lupus erythematodes kunnen nucleaire antigenen en auto-antistoffen immuuncomplexen vormen. Deze complexen activeren de klassieke complementroute.
Daardoor kunnen C3 en C4 worden verbruikt en ontstaan inflammatie en weefselschade.
Tegelijkertijd levert onvoldoende opruiming opnieuw nucleair materiaal aan. Zo kan een zichzelf onderhoudende lus ontstaan van antigenen, antistoffen, immuuncomplexen, complementactivatie en nieuwe schade.
Lage serumwaarden van C3 en C4 kunnen daarom passen bij actieve ziekte. Maar normale serumwaarden sluiten plaatselijke complementactivatie niet uit.
Eén concentratiemeting vertelt nooit het volledige verhaal.
Wat vertellen complementmetingen?
C3 en C4 meten de concentratie van afzonderlijke complementcomponenten. Deze kan dalen door verbruik, maar ook door een tekort of verminderde productie.
Functionele testen beantwoorden een andere vraag.
CH50 onderzoekt globaal of de klassieke en terminale route functioneel kunnen verlopen. AH50 doet dit voor de alternatieve en terminale route.
Daarnaast kunnen afbraak- en activatieproducten informatie geven over actuele complementactivatie. Bij deze bepalingen zijn monstervoorbewerking en interpretatie extra belangrijk, omdat complement ook na bloedafname geactiveerd kan raken.
Concentratie, verbruik, activatie en functionele capaciteit zijn dus verschillende grootheden.
Een ITE-testreactie is bovendien geen laboratoriummeting van C3, C4, CH50, AH50 of complementafbraakproducten. De uitkomsten mogen niet als onderling uitwisselbaar worden gepresenteerd.
Complement remmen is geen uniforme interventie
Nieuwe geneesmiddelen kunnen het complementsysteem op verschillende knooppunten remmen.
Upstreamremming van C3, factor B of factor D grijpt breed in op de vorming en versterking van C3b. Daarmee kan veel pathologische amplificatie worden voorkomen, maar mogelijk ook een groter deel van de normale opsonisatie en infectieafweer worden geraakt.
Downstreamremming van C5 of de C5a-receptor kan een deel van de C3-gemedieerde markering en opruiming behouden. Daar staat tegenover dat remming van de terminale route de bescherming tegen onder andere meningokokken verzwakt.
Het aangrijpingspunt bepaalt dus zowel de mogelijke winst als wat er van de normale complementfunctie verloren gaat.
“Complement remmen” is biologisch gezien geen eenduidige behandeling.
De HU360- en ITE-lens: welke functie blijft actief?
Binnen Michel Depeyrots interventies is ‘Soothing the Complement System’ de vijfde interventie.
De verdieping uit deze master helpt om daar een preciezere vraag van te maken.
Niet:
Moet complement worden uitgezet?
Maar:
- welke trigger of welk immuuncomplex activeert het systeem?
- via welke route kan de reactie worden gestart?
- staat opsonisatie, C5a-gedreven inflammatie of MAC meer op de voorgrond?
- werken de regulerende mechanismen voldoende?
- is complement nog betrokken bij aanval en schade, of vooral bij opruiming en herstel?
- en blijft de complementreactie na behandeling van de primaire aanvalsrelatie nog als onderhoudende lus aanwezig?
Zo werk je van klinisch patroon naar biologische functie, en niet van een vial rechtstreeks naar een conclusie.
Wat leer je in deze Master ITE?
Na deze master begrijp je onder andere:
- de drie activatieroutes van het complementsysteem;
- waarom de alternatieve route ook een krachtige versterkingslus is;
- hoe C3-convertases en C5-convertases de cascade sturen;
- het verschil tussen C3a, C3b, C5a en C5b;
- hoe opsonisatie micro-organismen, immuuncomplexen en celresten markeert;
- hoe het membrane attack complex wordt opgebouwd;
- waarom MAC ook sublytische signalering kan veroorzaken;
- hoe factor H, factor I, C1-INH, CD46, CD55 en CD59 eigen weefsel beschermen;
- waarom complementafhankelijke opruiming bijdraagt aan immuuntolerantie;
- hoe een tekort aan vroege complementcomponenten juist met auto-immuniteit kan samenhangen;
- hoe complementactivatie en -verbruik bij SLE verweven raken;
- waarom C3, C4, CH50 en AH50 verschillende vragen beantwoorden;
- waarom normale serumwaarden lokale complementactivatie niet volledig uitsluiten;
- waarom gerichte remming van C3, C5, C5aR, factor B of factor D verschillende consequenties heeft;
- en hoe je ITE-interventie 5 vanuit een nauwkeuriger biologisch denkkader kunt benaderen.
Voor wie?
Deze Master ITE is ontwikkeld voor ITE-therapeuten en andere ervaren gezondheidsprofessionals die het complementsysteem niet als een losse ontstekingsroute willen onthouden, maar als een dynamisch netwerk willen begrijpen.
Je hoeft de volledige cascade niet uit je hoofd te kennen. De routes worden stap voor stap opgebouwd met heldere, visuele schema’s en steeds gekoppeld aan hun biologische functie.
Je krijgt toegang tot een opgenomen masterclass van circa 45 minuten, zodat je ingewikkelde onderdelen in je eigen tempo kunt bekijken en opnieuw kunt volgen.
Van cascade naar biologische functie
Het complementsysteem beschermt alleen wanneer herkenning, versterking, opruiming en remming met elkaar in balans blijven.
Te weinig vroege complementfunctie kan de opruiming en tolerantie verstoren. Te veel of verkeerd begrensde activatie kan via C3a, C5a en MAC juist inflammatie en weefselschade versterken.
De juiste vraag is daarom niet hoeveel complement iemand heeft, maar:
Welke route is actief?
Welke functie wordt uitgevoerd?
Waar vindt de versterking plaats?
Welke rem houdt onvoldoende tegen?
En helpt complement nog bij opruiming — of onderhoudt het inmiddels de schade?
Van de eerste herkenning tot MAC — ontdek hoe complement beschermt, opruimt, versterkt en soms tegen het eigen weefsel keert.
→ Bekijk de Master ITE: Het complementsysteem – de diepte in
Herken de route. Begrijp de functie. Zoek het knooppunt.